Introducción: Cómo funciona la inmunidad adaptativa
La inmunidad innata reconoce rápidamente patrones de infección o daño. La inmunidad adaptativa añade otra capacidad: distinguir estructuras moleculares concretas, seleccionar los pocos linfocitos capaces de reconocerlas, multiplicarlos y conservar una parte de esa población como memoria. Este proceso tarda días durante el primer contacto, pero puede responder con mayor rapidez y eficacia cuando el mismo antígeno reaparece [1,2].
Sus protagonistas son los linfocitos T y B. Cada clon posee un receptor diferente, generado durante su desarrollo mediante recombinación de segmentos de ADN. El organismo construye así un repertorio extraordinariamente diverso antes de saber qué microorganismos encontrará.
Esa diversidad tiene un precio: también pueden aparecer receptores capaces de reconocer componentes propios, por lo que deben actuar mecanismos de tolerancia.
La inmunidad adaptativa no nace de una orden genérica de “defenderse”: comienza cuando un antígeno selecciona al clon adecuado y el contexto confirma si debe activarse.
En este artículo seguiremos el recorrido completo: captura y presentación del antígeno, activación de linfocitos T y B, producción de anticuerpos, expansión clonal, contracción y memoria. Los subtipos Th1, Th2, Th17 y Treg, así como la tolerancia inmunológica, se desarrollarán con mayor profundidad en capítulos propios.
Cómo funciona la inmunidad adaptativa: De la vacunación a la selección clonal
Mucho antes de conocer los linfocitos, la vacunación demostró que una exposición podía dejar protección duradera. Los trabajos de Edward Jenner y, más tarde, Louis Pasteur convirtieron esa observación en una estrategia preventiva. A finales del siglo XIX surgió el debate entre explicaciones humorales, centradas en sustancias del suero, y celulares, centradas en las células defensivas. Hoy sabemos que anticuerpos y células cooperan.
En el siglo XX, Frank Macfarlane Burnet formuló la teoría de la selección clonal: cada linfocito porta un receptor con una especificidad y el antígeno selecciona los clones compatibles, que proliferan y se diferencian [3,4]. Jacques Miller demostró después la función inmunológica del timo y ayudó a distinguir los linfocitos T de los B [5].
Esta perspectiva sustituyó la idea de que el antígeno moldeaba un anticuerpo desde cero. El repertorio existe previamente; la exposición elige qué clones crecerán.
Qué caracteriza a la inmunidad adaptativa
- Especificidad: cada receptor reconoce determinados epítopos o complejos péptido-HLA.
- Diversidad: millones de clones potenciales permiten responder frente a numerosos antígenos.
- Expansión clonal: los clones activados se multiplican antes de ejecutar plenamente su función.
- Especialización: distintas poblaciones responden de manera apropiada a amenazas extracelulares, intracelulares o tisulares.
- Contracción: al desaparecer el estímulo, la mayoría de las células efectoras muere.
- Memoria: una fracción persiste y facilita respuestas posteriores.
- Tolerancia: varios controles reducen la activación frente a componentes propios.
Estas propiedades no convierten a la inmunidad adaptativa en un sistema independiente. Para activarse correctamente necesita información procedente de la inmunidad innata: presentación antigénica, coestimulación y citocinas que describen el contexto [6].
Dónde comienza la respuesta
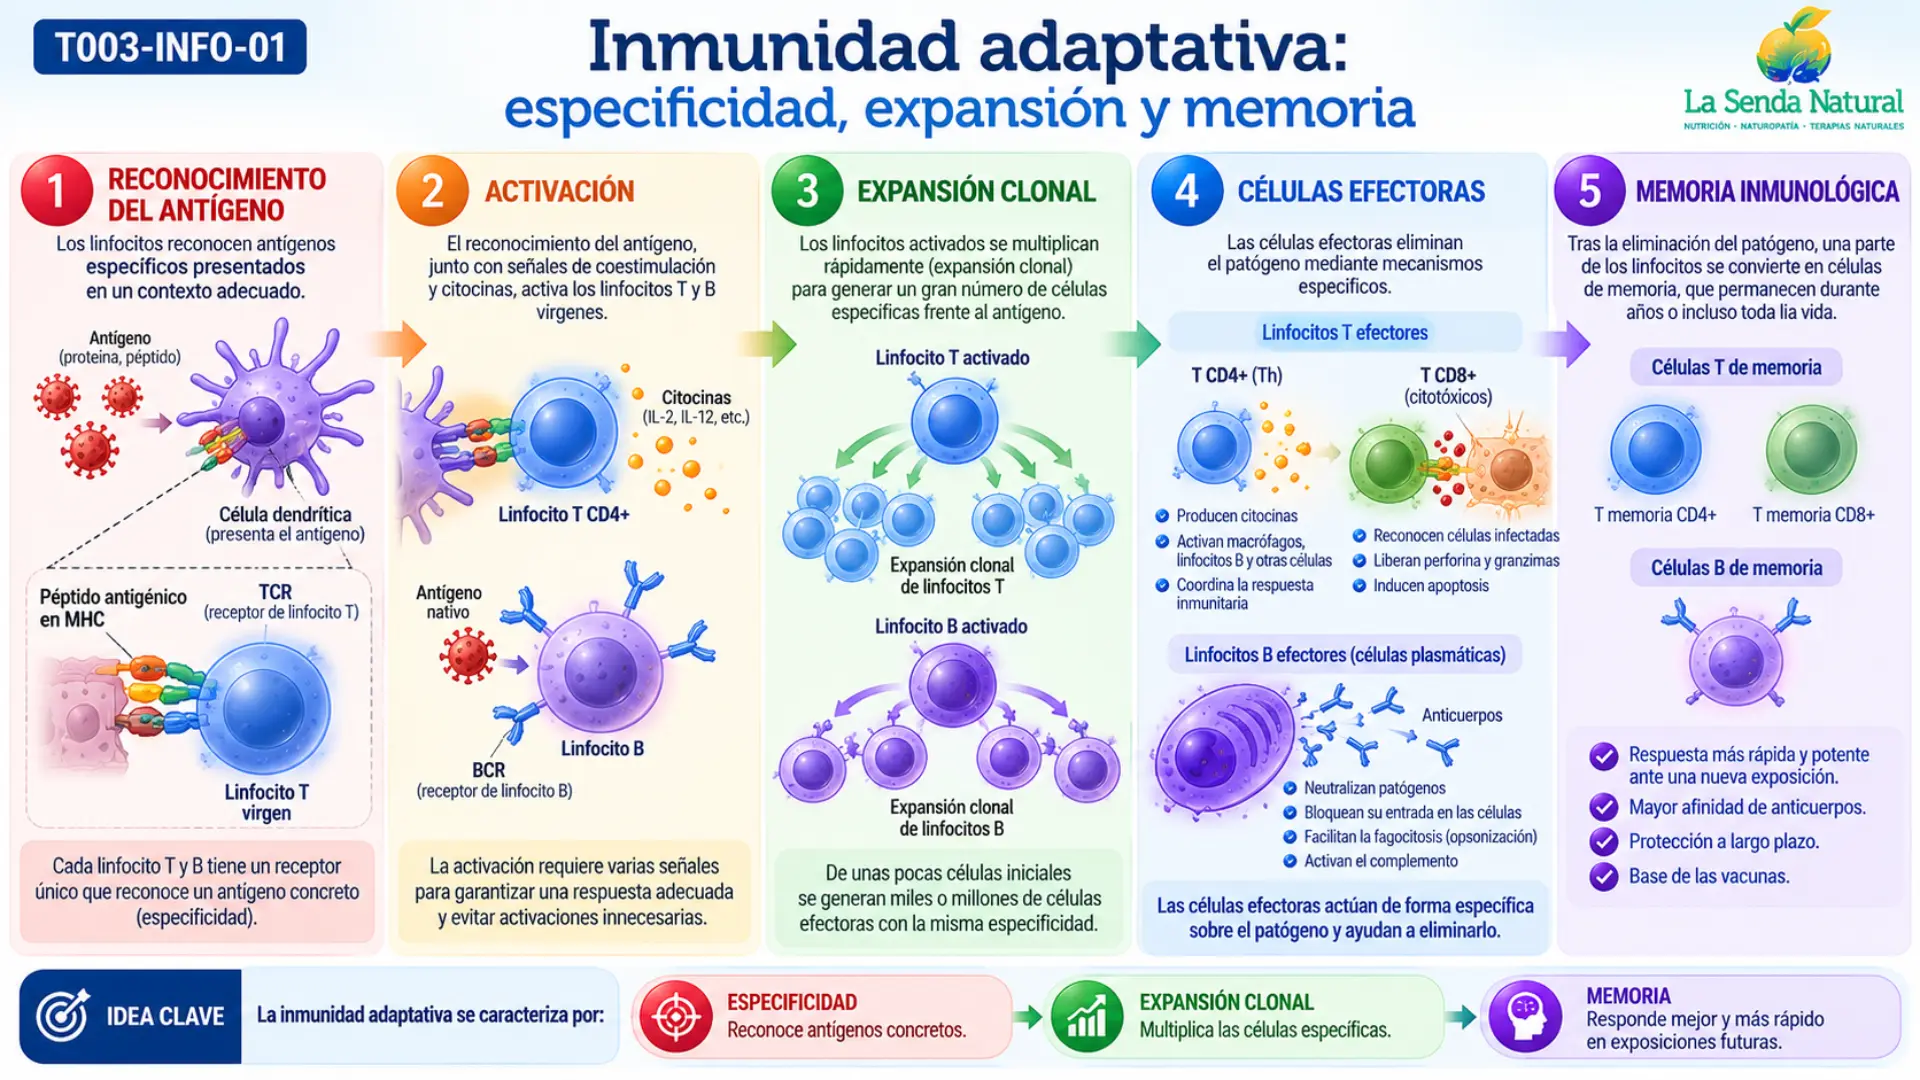
Los linfocitos vírgenes circulan entre sangre, linfa y órganos linfoides secundarios, principalmente ganglios linfáticos, bazo y tejidos linfoides asociados a mucosas. Allí encuentran antígenos y células presentadoras. Los ganglios reciben información de los tejidos a través de la linfa; el bazo filtra antígenos transportados por la sangre.
Las células dendríticas actúan como puente. Capturan material en los tejidos, perciben señales innatas, maduran y migran hacia el ganglio. Durante ese trayecto aumentan la presentación mediante HLA y la expresión de moléculas coestimuladoras. Así pueden activar linfocitos T vírgenes, una tarea que otros tipos celulares realizan con menor eficacia [6-8].
Antígeno, epítopo y receptor: tres conceptos distintos
Un antígeno es una molécula capaz de ser reconocida por receptores adaptativos. El epítopo es la parte concreta reconocida. Una proteína puede contener numerosos epítopos, por lo que una misma infección activa distintos clones. La respuesta resultante suele ser policlonal.
El receptor del linfocito B o BCR puede reconocer directamente proteínas, polisacáridos, lípidos y otras estructuras en su conformación natural. El receptor del linfocito T o TCR funciona de otro modo: reconoce principalmente fragmentos peptídicos presentados en una molécula HLA. Por eso, los linfocitos T no suelen “ver” al microorganismo completo.
HLA: el escaparate molecular de las células
Las moléculas HLA denominadas MHC en otras especies muestran péptidos en la superficie celular. El TCR inspecciona simultáneamente el péptido y la molécula HLA que lo contiene. Este fenómeno se denomina restricción por el MHC.
HLA clase I y linfocitos T CD8
HLA-I se expresa en casi todas las células nucleadas. Las proteínas citosólicas se degradan en el proteasoma; parte de los péptidos resultantes pasa al retículo endoplásmico mediante TAP, se carga en HLA-I y llega a la superficie. Los linfocitos T CD8 pueden detectar así péptidos derivados de virus o proteínas tumorales producidas dentro de la célula [7,8].
HLA clase II y linfocitos T CD4
HLA-II se expresa sobre todo en células dendríticas, macrófagos y linfocitos B. Los materiales captados del exterior se degradan en compartimentos endosómicos. La cadena invariante protege temporalmente la hendidura de HLA-II; después HLA-DM facilita el intercambio de CLIP por péptidos antigénicos. El complejo resultante es reconocido por linfocitos T CD4 [8].
Presentación cruzada
Algunas células dendríticas pueden dirigir antígenos externos hacia HLA-I. Esta presentación cruzada permite iniciar respuestas CD8 frente a virus o tumores aunque la dendrítica no esté infectada. Es una excepción funcional decisiva, no una mezcla indiscriminada de ambas rutas.
| Vía | Origen habitual | Célula T | Finalidad dominante |
| HLA-I | Proteínas citosólicas de células nucleadas | CD8 | Vigilar infección intracelular y transformación tumoral |
| HLA-II | Material captado en vesículas por presentadoras profesionales | CD4 | Coordinar macrófagos, linfocitos B y otras células |
| Presentación cruzada | Antígeno externo dirigido a HLA-I | CD8 | Iniciar citotoxicidad sin infectar a la dendrítica |
Los genes HLA son extremadamente polimórficos. Esta diversidad amplía los péptidos que una población puede presentar, pero determinadas variantes se asocian con riesgo de autoinmunidad, respuesta a algunos fármacos y compatibilidad en trasplantes. Asociación genética no significa destino inevitable.
Cómo se activa un linfocito T
La activación de un linfocito T virgen exige más que el reconocimiento del antígeno. El modelo de tres señales resume la integración necesaria [9,10].
- Señal 1: el TCR, acompañado por CD3, reconoce el complejo péptido-HLA; CD4 o CD8 estabiliza la interacción.
- Señal 2: moléculas coestimuladoras, especialmente CD28 en el linfocito y CD80/CD86 en la presentadora, confirman un contexto apropiado.
- Señal 3: citocinas del entorno orientan la diferenciación y el programa funcional de la célula activada.
Señal 1 + señal 2 + señal 3 → activación de factores de transcripción → IL-2 y CD25 → proliferación → diferenciación efectora y memoria.
En el interior celular, quinasas asociadas al TCR activan rutas que convergen en NFAT, NF-κB y AP-1. La célula produce IL-2 y aumenta CD25, la cadena alfa de su receptor, creando un circuito que favorece la expansión. Si reconoce antígeno sin coestimulación adecuada, puede quedar anérgica, morir o adquirir un estado tolerante. La consecuencia depende del tipo celular y el contexto.
Los linfocitos T CD4 coordinan la respuesta mediante citocinas y contacto celular. Ayudan a macrófagos y linfocitos B y organizan distintos perfiles efectores. Los T CD8 activados destruyen células diana mediante perforina y granzimas o mediante receptores de muerte como Fas. Estos mecanismos son precisos, pero pueden lesionar tejidos si se dirigen contra antígenos propios o persisten demasiado.
Cómo se activa un linfocito B
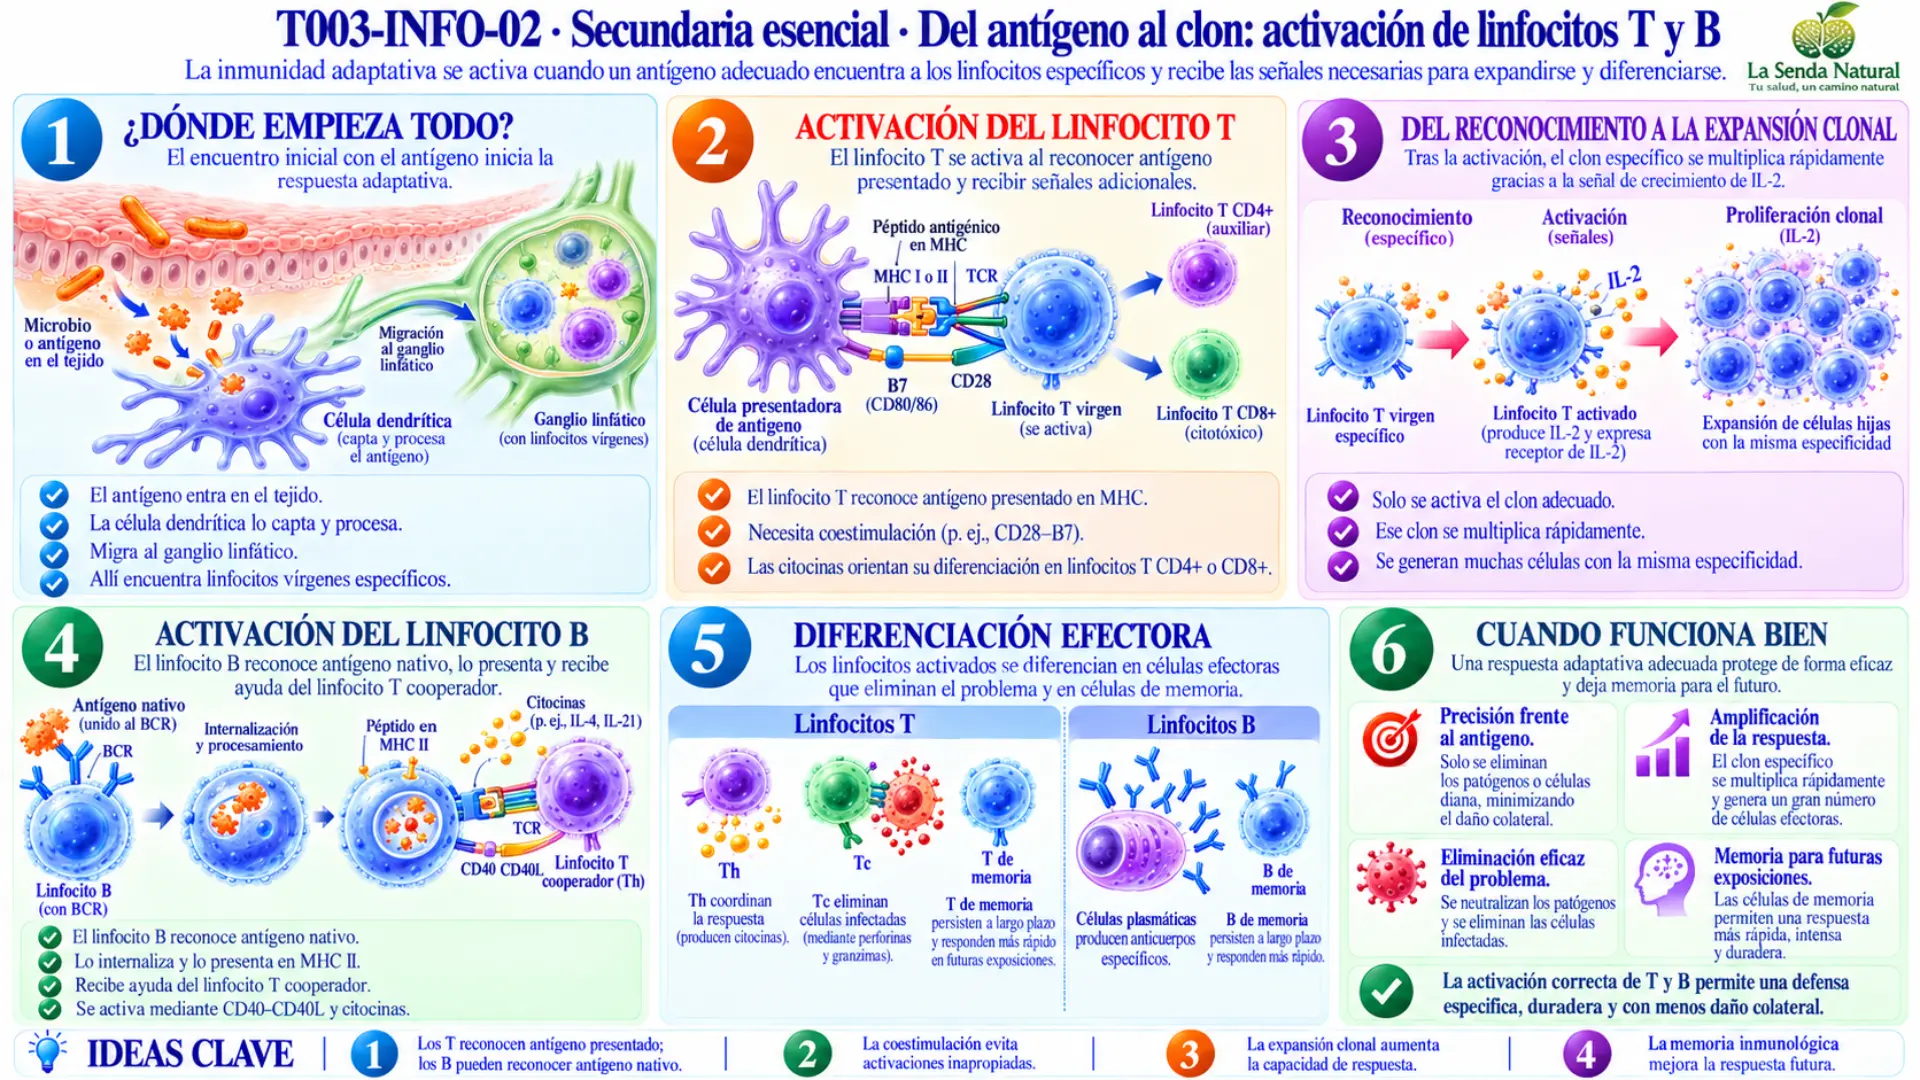
El linfocito B reconoce antígeno nativo mediante el BCR. La unión agrupa receptores y activa señales intracelulares. Además, el linfocito internaliza el antígeno, lo procesa y presenta péptidos mediante HLA-II. De este modo puede recibir ayuda de un linfocito T folicular colaborador o Tfh que reconozca un péptido del mismo antígeno [11].
El contacto CD40 del linfocito B con CD40L del Tfh y las citocinas proporcionan señales esenciales para proliferar, cambiar de isotipo, madurar afinidad y formar memoria. Algunos antígenos repetitivos pueden activar respuestas independientes de T, dominadas por IgM y con una memoria más limitada.
BCR reconoce antígeno → B presenta péptido en HLA-II → Tfh aporta CD40L y citocinas → expansión → célula plasmática o B de memoria.
El centro germinal: mejorar la respuesta
Tras la activación dependiente de T, una parte de los linfocitos B entra en folículos y forma centros germinales. En la zona oscura proliferan y la enzima AID introduce mutaciones somáticas en las regiones variables de las inmunoglobulinas. En la zona clara, sus receptores compiten por antígeno retenido y por ayuda de Tfh. Los clones con mejor reconocimiento tienen mayor probabilidad de sobrevivir [11-13].
Esta selección produce maduración de afinidad. AID también participa en el cambio de clase o isotipo. El linfocito conserva la región variable que reconoce el antígeno, pero sustituye la región constante: puede pasar de IgM a IgG, IgA o IgE. Por tanto, el cambio de clase modifica dónde actúa el anticuerpo y con qué receptores coopera, no el epítopo que reconoce.
El resultado son células plasmáticas secretoras, algunas de vida prolongada en médula ósea, y linfocitos B de memoria. El proceso es potente, pero la hipermutación exige controles porque altera deliberadamente el ADN.
Cómo funciona la inmunidad adaptativa: Qué hacen los anticuerpos
Los anticuerpos son formas secretadas de inmunoglobulina. Su región Fab reconoce el antígeno; la región Fc determina la interacción con receptores celulares y complemento. Unir el antígeno no siempre basta para eliminarlo: la región Fc conecta el reconocimiento específico con mecanismos efectores.
- Neutralización: bloquean la unión de toxinas o microorganismos a sus dianas.
- Opsonización: recubren partículas para facilitar su fagocitosis.
- Activación del complemento: determinadas IgM e IgG inician la vía clásica.
- Citotoxicidad dependiente de anticuerpos: células como las NK reconocen Fc sobre la diana.
- Protección de mucosas: IgA secretora actúa en superficies y secreciones.
- Activación de mastocitos y eosinófilos: IgE participa frente a ciertos parásitos y en alergia.
| Isotipo | Localización o momento | Funciones destacadas |
| IgM | Primeras fases; BCR del linfocito B virgen | Respuesta inicial, aglutinación y complemento |
| IgG | Sangre y tejidos; respuesta madura | Neutralización, opsonización, complemento y transferencia placentaria |
| IgA | Mucosas, saliva, lágrimas y leche | Neutralización y protección de superficies |
| IgE | Unida a mastocitos y basófilos | Parásitos helmintos e hipersensibilidad inmediata |
| IgD | Superficie de B vírgenes | Componente del BCR; función sérica limitada |
Las funciones exactas varían entre subclases y contextos. Una concentración de anticuerpos tampoco equivale siempre a protección: importan afinidad, neutralización, localización, funciones Fc y participación de células T [14].
Selección, expansión y contracción clonal
Antes del contacto existen pocos linfocitos capaces de reconocer un epítopo concreto. Tras activarse, esos clones se dividen numerosas veces. La expansión genera suficientes células efectoras para controlar la amenaza. Cuando el antígeno y las señales inflamatorias disminuyen, la mayoría pierde señales de supervivencia y entra en apoptosis. Esta contracción evita mantener un ejército innecesario y reduce el riesgo de daño.
Una fracción sobrevive como memoria. La respuesta adaptativa eficaz es, por tanto, una secuencia regulada: selección, expansión, función efectora, contracción y persistencia de memoria.
Memoria inmunológica
Los linfocitos de memoria son más numerosos que los precursores iniciales y responden con umbrales, localizaciones y programas distintos. Entre los T se describen poblaciones de memoria central, efectora y residente en tejidos. Las residentes permanecen en barreras como piel, pulmón o intestino y pueden responder cerca del punto de entrada [15,16].
La memoria humoral depende de linfocitos B de memoria y células plasmáticas de larga vida. Estas últimas pueden mantener anticuerpos circulantes sin una reexposición continua. Los B de memoria se reactivan y generan nuevas células secretoras cuando encuentran de nuevo el antígeno.
| Característica | Respuesta primaria | Respuesta secundaria |
| Inicio | Más lento: deben activarse clones vírgenes | Más rápido: existen células de memoria |
| Magnitud | Menor en las primeras fases | Habitualmente mayor |
| Anticuerpos | IgM inicial; afinidad en desarrollo | Más anticuerpos de clase cambiada y mayor afinidad |
| Duración | Contracción tras eliminar el estímulo | Puede sostenerse mejor, según antígeno y tejido |
La memoria no garantiza inmunidad esterilizante ni dura siempre toda la vida. Depende del agente, la vía de exposición, la edad, la inmunosupresión y la calidad de la respuesta. Un patógeno que cambia sus antígenos o evita la inmunidad puede reinfectar aunque persista protección frente a enfermedad grave.
Vacunas: construir memoria sin padecer la enfermedad
Las vacunas presentan antígenos o instrucciones para producirlos en un contexto diseñado para inducir inmunidad. Los adyuvantes y las señales generadas por la plataforma activan mecanismos innatos que favorecen presentación, coestimulación y diferenciación. Sin ese contexto, un antígeno aislado puede producir una respuesta débil [17,18].
Las dosis de recuerdo no significan necesariamente que la primera vacuna haya fallado. Pueden aumentar el número de células de memoria, elevar anticuerpos, consolidar la maduración de afinidad o recuperar protección que disminuye. La pauta depende del patógeno y de la evidencia clínica, no de una regla universal.
Tolerancia: responder a lo extraño sin atacar lo propio
La diversidad de receptores genera inevitablemente clones autorreactivos. En el timo, muchos linfocitos T peligrosos se eliminan o se desvían hacia programas reguladores; en la médula ósea, los B pueden editar su receptor, quedar inactivos o morir. Esta es la tolerancia central.
Los clones que escapan encuentran controles periféricos: necesidad de coestimulación, anergia, eliminación, receptores inhibidores y células T reguladoras [19]. La tolerancia no es perfecta. Genes HLA, infecciones, daño tisular, hormonas y otros factores pueden modificar el riesgo de autoinmunidad, pero rara vez explican una enfermedad por sí solos.
Cuando la inmunidad adaptativa se desregula
- Inmunodeficiencia: defectos de linfocitos, presentación o anticuerpos aumentan vulnerabilidades específicas.
- Alergia: respuestas frente a sustancias habitualmente inocuas pueden implicar IgE y linfocitos colaboradores.
- Autoinmunidad: linfocitos y anticuerpos reconocen componentes propios en un contexto patológico.
- Rechazo de trasplante: las diferencias HLA y otros antígenos activan respuestas contra el injerto.
- Cáncer: los tumores pueden perder antígenos, reducir presentación o activar frenos inmunitarios para escapar.
Estas categorías pueden compartir mecanismos, pero no son equivalentes. La presencia de autoanticuerpos aislados, por ejemplo, no confirma por sí sola una enfermedad autoinmune: debe interpretarse con síntomas, exploración y otros datos clínicos.
Qué significa cuidar la inmunidad adaptativa
Una respuesta adaptativa equilibrada necesita producción celular, síntesis de proteínas, órganos linfoides funcionales y señales innatas proporcionadas. El estado nutricional, el sueño, el ejercicio, el tabaco, las infecciones y determinados tratamientos pueden influir. Sin embargo, “estimular las defensas” de forma inespecífica no es un objetivo fisiológico preciso: en alergia o autoinmunidad, una activación mayor podría ser contraproducente.
Corregir deficiencias, seguir las vacunas indicadas y tratar las enfermedades subyacentes son cuestiones diferentes de consumir productos que prometen potenciar la inmunidad. La alimentación, los micronutrientes y los suplementos se estudiarán en guías específicas, separando mecanismos experimentales de beneficios clínicos demostrados.
Conclusión
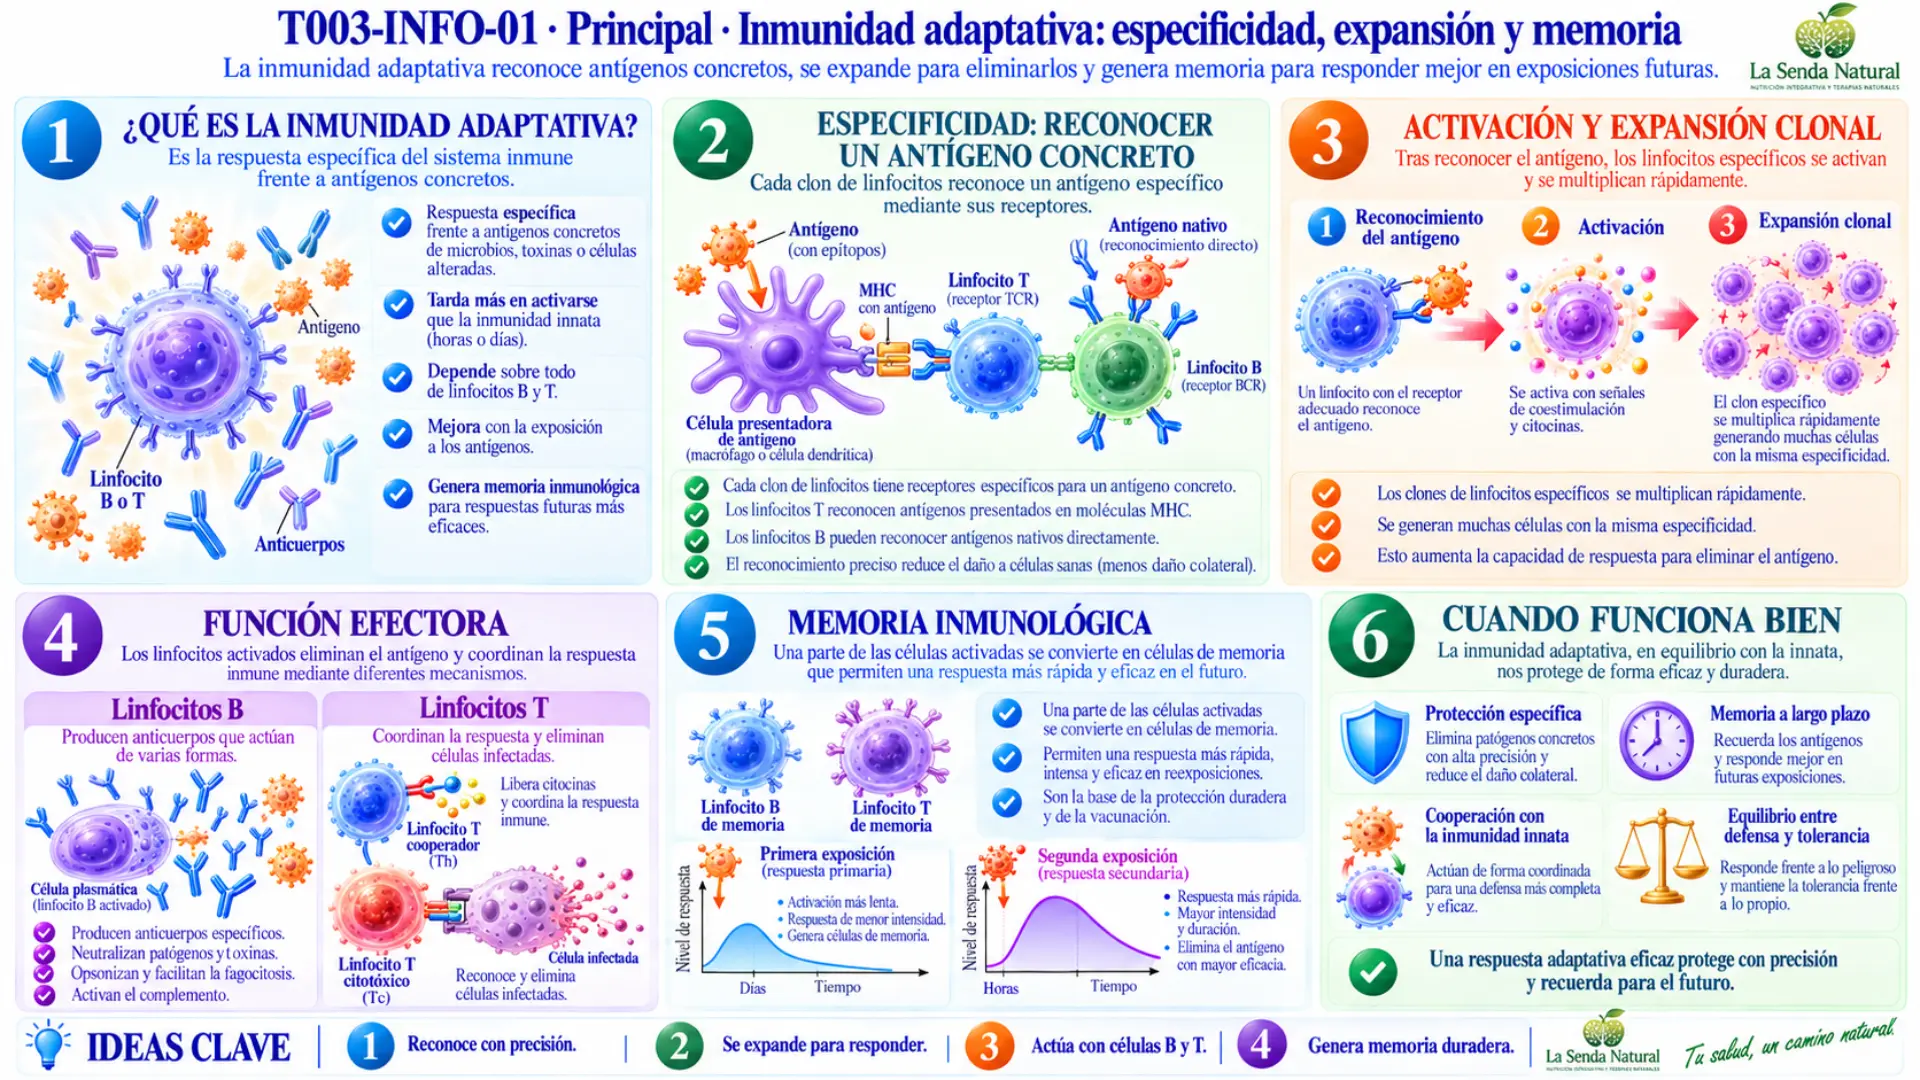
La inmunidad adaptativa transforma el reconocimiento molecular en una respuesta seleccionada. Las células dendríticas presentan péptidos mediante HLA; los linfocitos T integran antígeno, coestimulación y citocinas; los linfocitos B reciben señales para producir anticuerpos, cambiar de isotipo y madurar afinidad. Después, la mayoría de los efectores desaparece y una parte persiste como memoria.
Su fortaleza no reside únicamente en atacar con precisión. También depende de tolerar lo propio, detener la expansión cuando deja de ser necesaria y conservar exactamente la información útil. Cuando estos controles fallan pueden aparecer inmunodeficiencia, alergia, autoinmunidad o rechazo.
La memoria inmunológica no es un archivo pasivo: es una población viva de células y anticuerpos preparada para convertir una segunda exposición en una respuesta distinta.
Preguntas frecuentes
¿Qué diferencia principal existe entre inmunidad innata y adaptativa?
La innata responde rápidamente mediante receptores preformados frente a patrones compartidos. La adaptativa selecciona clones de linfocitos T y B con receptores diversos, tarda más en el primer contacto y genera memoria específica.
¿Los linfocitos T producen anticuerpos?
No. Los anticuerpos los secretan células plasmáticas derivadas de linfocitos B. Los T coordinan respuestas o destruyen células diana y pueden proporcionar ayuda decisiva a los B.
¿Qué diferencia hay entre HLA-I y HLA-II?
HLA-I presenta principalmente péptidos citosólicos a T CD8 y aparece en casi todas las células nucleadas. HLA-II presenta material captado en vesículas a T CD4 y predomina en células presentadoras profesionales.
¿Por qué hacen falta tres señales para activar un linfocito T?
El reconocimiento identifica el antígeno, la coestimulación confirma el contexto y las citocinas orientan el programa funcional. Esta integración limita activaciones inadecuadas.
¿Qué significa cambiar de isotipo?
El linfocito B conserva la especificidad de su región variable, pero cambia la región constante del anticuerpo. Así modifica su distribución y sus funciones efectoras.
¿La memoria inmunológica dura toda la vida?
No siempre. Su duración depende del antígeno, la infección o vacuna, el tejido, la edad y otros factores. Algunas respuestas son muy persistentes y otras requieren refuerzos.
¿Tener autoanticuerpos significa tener una enfermedad autoinmune?
No necesariamente. Algunos aparecen en personas sanas o antes de síntomas. Su significado depende del tipo, título, persistencia y contexto clínico.
¿Se puede potenciar la inmunidad adaptativa con suplementos?
No existe un suplemento universal que la mejore de forma segura. Corregir una deficiencia puede ser útil, pero activar indiscriminadamente la inmunidad no siempre beneficia y puede causar daño.
Descargo de responsabilidad
Hemos realizado todos los esfuerzos posibles para garantizar que la información proporcionada sea precisa, actualizada y completa, pero no se ofrece ninguna garantía al respecto.
Esta información es un recurso de referencia diseñado como un complemento y no un sustituto de la experiencia, habilidad, conocimiento de los profesionales de la salud, ni pretende ser un diagnóstico ni una terapia referenciada.
La ausencia de una advertencia para un determinado suplemento/alimento o la combinación de los mismos no debe interpretarse de ninguna manera como una indicación de seguridad, eficacia o idoneidad para un paciente determinado.

Ultimos artículos publicados
Si presentas infecciones recurrentes, alergia, inflamación persistente o una enfermedad autoinmune diagnosticada, la valoración debe ser individual. En La Senda Natural estudiamos alimentación, estado nutricional, composición corporal, descanso, estilo de vida, analíticas y tratamiento médico para diseñar un acompañamiento personalizado y coordinado con el seguimiento sanitario correspondiente.
Bibliografía
- Burnet FM. A modification of Jerne’s theory of antibody production using the concept of clonal selection. Aust J Sci. 1957;20:67-69. https://pubmed.ncbi.nlm.nih.gov/816431/
- Cohn M, Mitchison NA, Paul WE, Silverstein AM, Talmage DW, Weigert M. Reflections on the clonal-selection theory. Nat Rev Immunol. 2007;7:823-830. https://doi.org/10.1038/nri2177
- Miller JFAP. Immunological function of the thymus. Lancet. 1961;2:748-749. https://doi.org/10.1016/S0140-6736(61)90693-6
- Iwasaki A, Medzhitov R. Control of adaptive immunity by the innate immune system. Nat Immunol. 2015;16:343-353. https://doi.org/10.1038/ni.3123
- Blum JS, Wearsch PA, Cresswell P. Pathways of antigen processing. Annu Rev Immunol. 2013;31:443-473. https://doi.org/10.1146/annurev-immunol-032712-095910
- Roche PA, Furuta K. The ins and outs of MHC class II-mediated antigen processing and presentation. Nat Rev Immunol. 2015;15:203-216. https://doi.org/10.1038/nri3818
- Smith-Garvin JE, Koretzky GA, Jordan MS. T cell activation. Annu Rev Immunol. 2009;27:591-619. https://doi.org/10.1146/annurev.immunol.021908.132706
- Chen L, Flies DB. Molecular mechanisms of T cell co-stimulation and co-inhibition. Nat Rev Immunol. 2013;13:227-242. https://doi.org/10.1038/nri3405
- Crotty S. T follicular helper cell biology: a decade of discovery and diseases. Immunity. 2019;50:1132-1148. https://doi.org/10.1016/j.immuni.2019.04.011
- Victora GD, Nussenzweig MC. Germinal centers. Annu Rev Immunol. 2012;30:429-457. https://doi.org/10.1146/annurev-immunol-020711-075032
- Mesin L, Ersching J, Victora GD. Germinal center B cell dynamics. Immunity. 2016;45:471-482. https://doi.org/10.1016/j.immuni.2016.09.001
- Plotkin SA. Correlates of protection induced by vaccination. Clin Vaccine Immunol. 2010;17:1055-1065. https://doi.org/10.1128/CVI.00131-10
- Sallusto F, Geginat J, Lanzavecchia A. Central memory and effector memory T cell subsets. Annu Rev Immunol. 2004;22:745-763. https://doi.org/10.1146/annurev.immunol.22.012703.104702
- Masopust D, Soerens AG. Tissue-resident T cells and other resident leukocytes. Annu Rev Immunol. 2019;37:521-546. https://doi.org/10.1146/annurev-immunol-042617-053214
- Pulendran B, Ahmed R. Immunological mechanisms of vaccination. Nat Immunol. 2011;12:509-517. https://doi.org/10.1038/ni.2039
- Pollard AJ, Bijker EM. A guide to vaccinology: from basic principles to new developments. Nat Rev Immunol. 2021;21:83-100. https://doi.org/10.1038/s41577-020-00479-7
- Sakaguchi S, Yamaguchi T, Nomura T, Ono M. Regulatory T cells and immune tolerance. Cell. 2008;133:775-787. https://doi.org/10.1016/j.cell.2008.05.009
