Introducción: Cómo funciona la inmunidad innata
Antes de que el organismo fabrique anticuerpos específicos o expanda un clon de linfocitos T, ya se ha puesto en marcha una respuesta defensiva. La piel intenta impedir la entrada; el moco atrapa partículas; los cilios desplazan secreciones; el ácido gástrico destruye numerosos microorganismos; las proteínas del complemento circulan listas para activarse; y macrófagos residentes vigilan continuamente los tejidos.
A este conjunto de barreras, células, receptores y moléculas se le denomina inmunidad innata. Su principal ventaja es la rapidez: puede actuar en segundos, minutos u horas. Sin embargo, describirla como una defensa primitiva e inespecífica resulta insuficiente. Reconoce familias enteras de señales, distingue contextos de daño y adapta su comportamiento al tejido en el que se encuentra [1-4].
La inmunidad innata no espera a conocer el nombre exacto del invasor: identifica patrones de peligro, contiene el problema y decide qué tipo de ayuda será necesaria.
Este artículo explica cómo se inicia esa respuesta, qué barreras intervienen, cómo reconocen el peligro los receptores PRR, qué funciones desarrollan neutrófilos, macrófagos, células dendríticas y NK, cómo actúa el complemento y por qué una defensa eficaz debe terminar mediante un proceso activo de resolución.
De la fagocitosis a los receptores de reconocimiento de patrones
La historia moderna de la inmunidad innata comenzó a finales del siglo XIX con Élie Metchnikoff. Al observar células móviles que rodeaban y engullían cuerpos extraños, propuso que la fagocitosis era un mecanismo central de defensa. Aquella idea compitió durante años con las explicaciones centradas en los componentes solubles del suero, pero finalmente se comprendió que ambos sistemas cooperaban.
Durante gran parte del siglo XX se consideró que la inmunidad innata era rápida pero poco sofisticada, mientras que toda la especificidad y la memoria pertenecían a la inmunidad adaptativa. El descubrimiento de los receptores Toll y Toll-like modificó esta visión. Charles Janeway había propuesto que las células innatas debían poseer receptores codificados en la línea germinal capaces de reconocer estructuras conservadas de los microorganismos. Los trabajos posteriores sobre TLR confirmaron este principio [2,5].
Más tarde se identificaron receptores citosólicos como NLR, RLR y cGAS, capaces de detectar componentes microbianos o alteraciones internas. La inmunidad innata pasó a entenderse como un sistema organizado de sensores, vías de señalización y programas efectores.
Qué caracteriza a la inmunidad innata
- Está presente antes del primer contacto con un microorganismo.
- Responde con rapidez, generalmente en minutos u horas.
- Utiliza receptores codificados en la línea germinal.
- Reconoce patrones compartidos por grupos de microorganismos y señales de daño celular.
- Actúa mediante barreras, fagocitos, células NK, complemento, interferones y otras proteínas solubles.
- Inicia y orienta la inmunidad adaptativa.
- Puede sufrir reprogramación funcional tras determinadas exposiciones, fenómeno denominado inmunidad entrenada.
Innato no significa invariable. La edad, el tejido, el metabolismo, el sueño, las hormonas, las exposiciones previas y el entorno microbiano pueden modificar la intensidad y calidad de la respuesta.
Primera línea: barreras físicas, químicas y biológicas
La piel
La epidermis queratinizada crea una barrera física difícil de atravesar. El pH, los lípidos, la descamación y los péptidos antimicrobianos contribuyen a limitar el crecimiento microbiano. Los queratinocitos también expresan receptores de reconocimiento y liberan citocinas y quimiocinas cuando detectan lesión o infección. Por tanto, la piel no es un envoltorio pasivo, sino un órgano inmunológico.
Las mucosas
Los aparatos respiratorio, digestivo y genitourinario necesitan superficies permeables para intercambiar gases, absorber nutrientes o permitir funciones reproductivas. Esa permeabilidad crea vulnerabilidad. El organismo la compensa mediante moco, uniones intercelulares, péptidos antimicrobianos, anticuerpos secretados y células inmunitarias residentes.
En el aparato respiratorio, el aclaramiento mucociliar desplaza partículas hacia el exterior. En el estómago, la acidez destruye muchos microorganismos. En el intestino, el peristaltismo, la capa de moco, las células de Paneth y la renovación epitelial reducen el contacto directo entre microbios y tejido.
La microbiota
Las comunidades microbianas residentes ocupan nichos, compiten por nutrientes, producen metabolitos y colaboran en la maduración inmunitaria. La relación no es simplemente amistosa o perjudicial: depende de la especie, la localización y el estado de la barrera. Un microorganismo tolerado en la luz intestinal puede desencadenar inflamación si atraviesa el epitelio [6].
Barrera íntegra → menor penetración microbiana → menor necesidad de inflamación → conservación de la tolerancia local.
Cómo reconoce el peligro la inmunidad innata
PAMP: patrones asociados a microorganismos
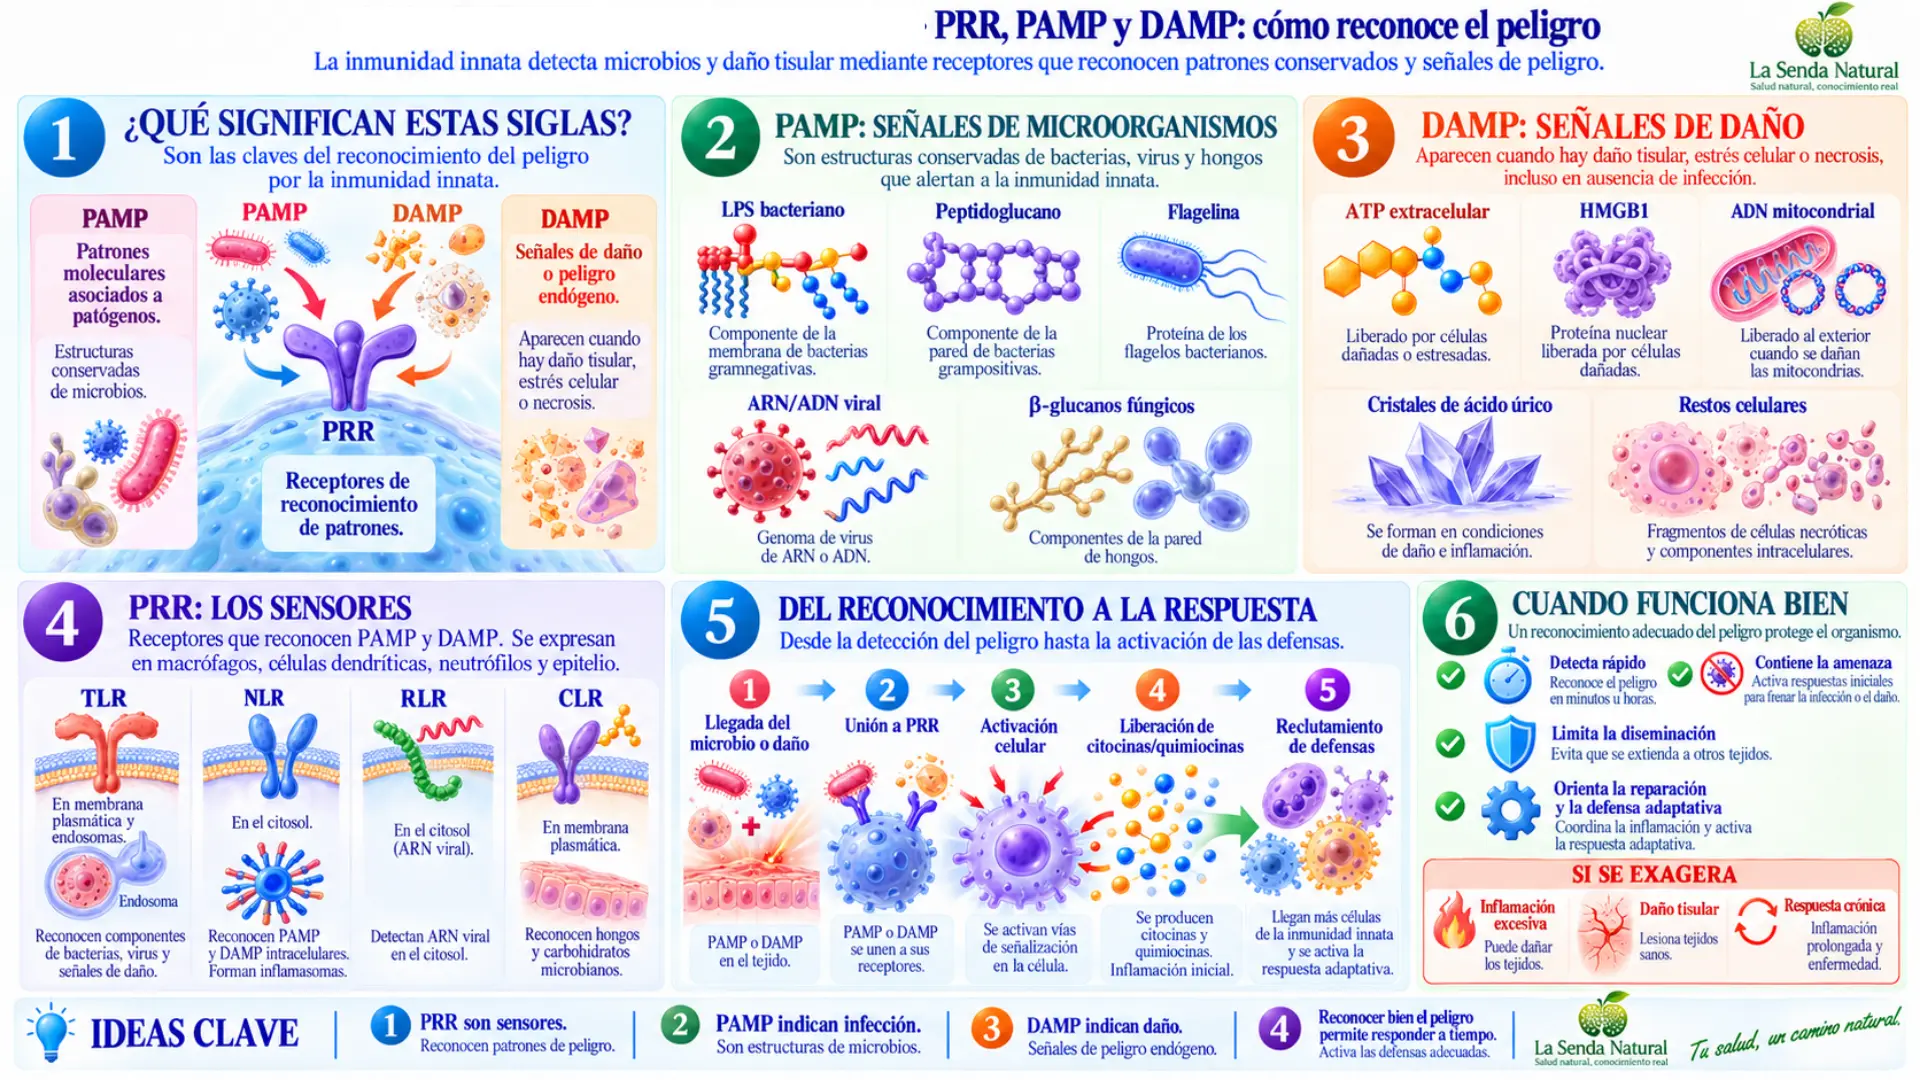
Los PAMP son estructuras conservadas que aparecen en amplios grupos microbianos: lipopolisacárido de bacterias gramnegativas, lipoproteínas bacterianas, flagelina, ARN viral o determinados componentes de paredes fúngicas. Un PAMP no identifica necesariamente una especie concreta; informa de la presencia de una categoría de amenaza.
DAMP: señales asociadas a daño
Los DAMP son moléculas propias que aparecen en un lugar o contexto anómalo tras lesión, necrosis o estrés celular. ATP extracelular, cristales de urato, ADN fuera de su compartimento habitual y determinadas proteínas nucleares pueden actuar como señales de alarma. Esto explica por qué puede aparecer inflamación estéril sin infección [7,8].
PRR: receptores de reconocimiento de patrones
Los PRR detectan PAMP y DAMP. Se encuentran en la membrana plasmática, endosomas, citosol o como proteínas solubles. Su localización es importante: un ácido nucleico dentro del núcleo es normal, mientras que en determinados compartimentos puede indicar infección o daño.
| Familia | Localización | Señales reconocidas | Resultado principal |
| TLR | Membrana/endosoma | Lípidos, proteínas y ácidos nucleicos microbianos | NF-κB, interferones y citocinas |
| NLR | Citosol | Productos bacterianos, estrés y daño | Inflamación e inflamasomas |
| RLR | Citosol | ARN viral | Interferones tipo I y III |
| cGAS-STING | Citosol/retículo | ADN en localización anómala | Interferón tipo I |
| CLR | Membrana | Carbohidratos microbianos, especialmente fúngicos | Fagocitosis y citocinas |
Del receptor al núcleo: la cadena de señalización
Reconocer una señal no basta. El receptor debe transmitir información hacia el interior celular. Adaptadores como MyD88 o TRIF activan quinasas y factores de transcripción. NF-κB favorece la expresión de citocinas, quimiocinas y enzimas inflamatorias; AP-1 regula otros programas de respuesta; e IRF3 e IRF7 promueven interferones antivirales.
PAMP/DAMP → PRR → adaptadores → quinasas → NF-κB, AP-1 o IRF → citocinas, quimiocinas e interferones → respuesta tisular.
Esta secuencia no funciona como una línea aislada. Las señales convergen, se amplifican y reciben frenos internos. Proteínas como A20/TNFAIP3, SOCS y fosfatasas ayudan a limitar la duración de la respuesta. Sin regulación, una herramienta protectora puede convertirse en fuente de daño.
Inflamasomas: activar IL-1β e IL-18
Los inflamasomas son complejos multiproteicos citosólicos. NLRP3 es el más divulgado, pero no el único. Su activación suele explicarse mediante dos pasos. La primera señal induce la síntesis de pro-IL-1β y otros componentes mediante NF-κB. Una segunda señal, relacionada con alteraciones iónicas, ATP extracelular, daño lisosomal o estrés celular, promueve el ensamblaje del complejo.
Señal 1 → NF-κB → pro-IL-1β y NLRP3. Señal 2 → ensamblaje del inflamasoma → caspasa-1 → IL-1β e IL-18 maduras + piroptosis.
La piroptosis es una forma inflamatoria de muerte celular asociada a poros de gasdermina. Puede ayudar a contener determinadas infecciones, pero una activación descontrolada contribuye al daño. No debe afirmarse que toda inflamación crónica dependa de NLRP3 ni que cualquier compuesto que lo modifique en células tenga eficacia clínica demostrada.
Las células protagonistas
Neutrófilos: llegada rápida y potencia destructiva
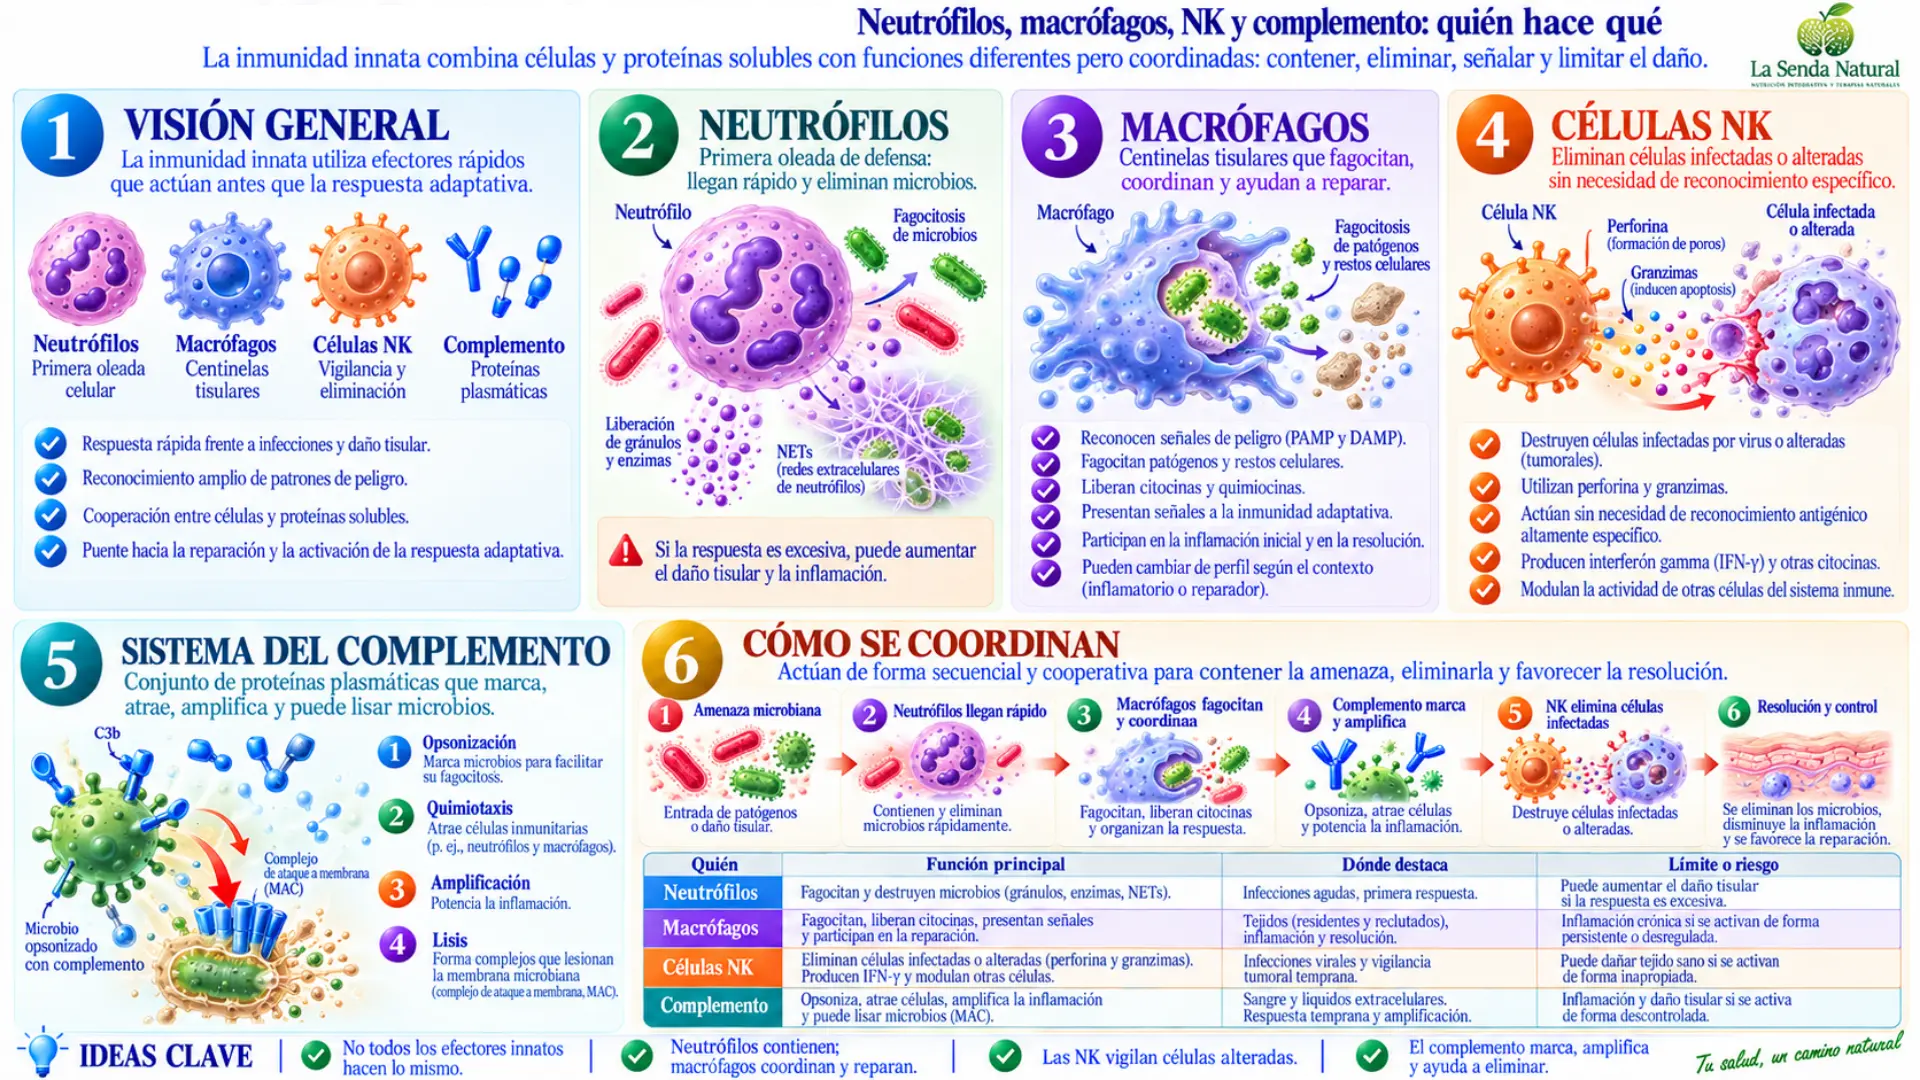
Los neutrófilos son abundantes en sangre y suelen ser de los primeros en llegar al tejido. Siguen gradientes de quimiocinas y productos microbianos, atraviesan el endotelio y fagocitan. Destruyen microorganismos mediante enzimas, péptidos antimicrobianos y especies reactivas de oxígeno. También pueden formar trampas extracelulares de neutrófilos o NET.
Las NET inmovilizan microorganismos, pero su exceso puede dañar el endotelio, favorecer trombosis y exponer autoantígenos. La potencia antimicrobiana exige control: después de actuar, los neutrófilos deben morir de forma ordenada y ser retirados por macrófagos.
Monocitos y macrófagos: defensa, limpieza y reparación
Los monocitos circulan por la sangre y pueden entrar en tejidos inflamados. Muchos macrófagos residentes, sin embargo, se originan durante el desarrollo embrionario y se mantienen localmente. Existen macrófagos especializados en hígado, pulmón, cerebro, hueso y otros órganos [9].
Sus funciones incluyen fagocitar, producir citocinas, presentar antígenos, retirar células muertas y coordinar reparación. La división M1/M2 puede ser didáctica, pero simplifica una diversidad mucho mayor: los macrófagos adoptan estados continuos definidos por múltiples señales del tejido [10].
Células dendríticas: el puente informativo
Capturan antígenos en tejidos periféricos y, tras recibir señales apropiadas, migran hacia ganglios linfáticos. Allí presentan péptidos mediante moléculas HLA y aportan coestimulación y citocinas a los linfocitos T. De este modo, la inmunidad innata no solo contiene una infección: selecciona el tipo de respuesta adaptativa que conviene desarrollar.
Células NK: vigilancia de células alteradas
Las células NK integran señales activadoras e inhibitorias. Muchas células sanas expresan HLA clase I, que transmite señales inhibitorias. Algunas células infectadas o tumorales reducen HLA-I o expresan ligandos de estrés; entonces puede inclinarse la balanza hacia la citotoxicidad. Las NK liberan perforina y granzimas y producen IFN-γ [11].
Este mecanismo muestra de nuevo que inmunidad innata y adaptativa cooperan.
Mastocitos, eosinófilos y basófilos
Los mastocitos residen en tejidos próximos a superficies y vasos. Liberan histamina, proteasas, lípidos y citocinas; participan en defensa, reparación y alergia. Los eosinófilos son relevantes frente a determinados parásitos y en enfermedades eosinofílicas. Los basófilos circulantes comparten algunos mediadores, pero constituyen una población distinta. Reducirlos a “células de la alergia” oculta funciones más amplias.
Fagocitosis: reconocer, engullir y destruir
La fagocitosis comienza cuando un receptor reconoce directamente una partícula o cuando esta ha sido marcada por opsoninas, como C3b o anticuerpos. La membrana rodea el objetivo y forma un fagosoma. Después se fusiona con lisosomas, se acidifica y recibe enzimas, péptidos antimicrobianos y especies reactivas.
Reconocimiento u opsonización → fagosoma → fusión con lisosoma → acidificación y estallido respiratorio → destrucción → eliminación o presentación de fragmentos.
Las especies reactivas no son únicamente residuos perjudiciales. En cantidades controladas forman parte del arsenal antimicrobiano. El problema aparece cuando se producen fuera de contexto, superan los sistemas antioxidantes o lesionan el tejido circundante.
El sistema del complemento
El complemento reúne más de treinta proteínas plasmáticas y de membrana. Puede activarse por la vía clásica, la vía de las lectinas o la vía alternativa. Las tres convergen en la activación de C3 y después pueden alcanzar C5 y el complejo de ataque a membrana [12].
- C3b y derivados opsonizan superficies y facilitan la fagocitosis.
- C3a y C5a favorecen inflamación y reclutamiento celular.
- El complejo C5b-9 puede formar poros en determinadas membranas.
- Proteínas reguladoras protegen las células propias frente a la activación accidental.
Complemento → C3b sobre el objetivo → receptor de complemento del fagocito → ingestión y destrucción.
La vía clásica puede iniciarse mediante anticuerpos, por lo que el complemento actúa como un punto de encuentro entre inmunidad innata y adaptativa. Sus alteraciones pueden aumentar infecciones y, paradójicamente, algunas deficiencias tempranas del complemento se asocian con autoinmunidad por una eliminación deficiente de restos e inmunocomplejos.
Interferones y defensa antiviral
Cuando receptores como TLR, RLR o cGAS-STING detectan ácidos nucleicos en un contexto compatible con infección, pueden inducir interferones tipo I y III. Estos mensajeros activan genes estimulados por interferón en la propia célula y en células cercanas, creando un estado antiviral que dificulta la replicación y mejora la vigilancia inmunitaria.
Detección de ARN/ADN anómalo → IRF3/IRF7 → interferones → receptor de interferón → JAK/STAT → genes antivirales.
Los interferones son esenciales, pero una producción persistente puede participar en daño y autoinmunidad. La misma vía puede ser protectora durante una infección aguda y perjudicial cuando permanece activada sin control.
Inflamación local y respuesta sistémica
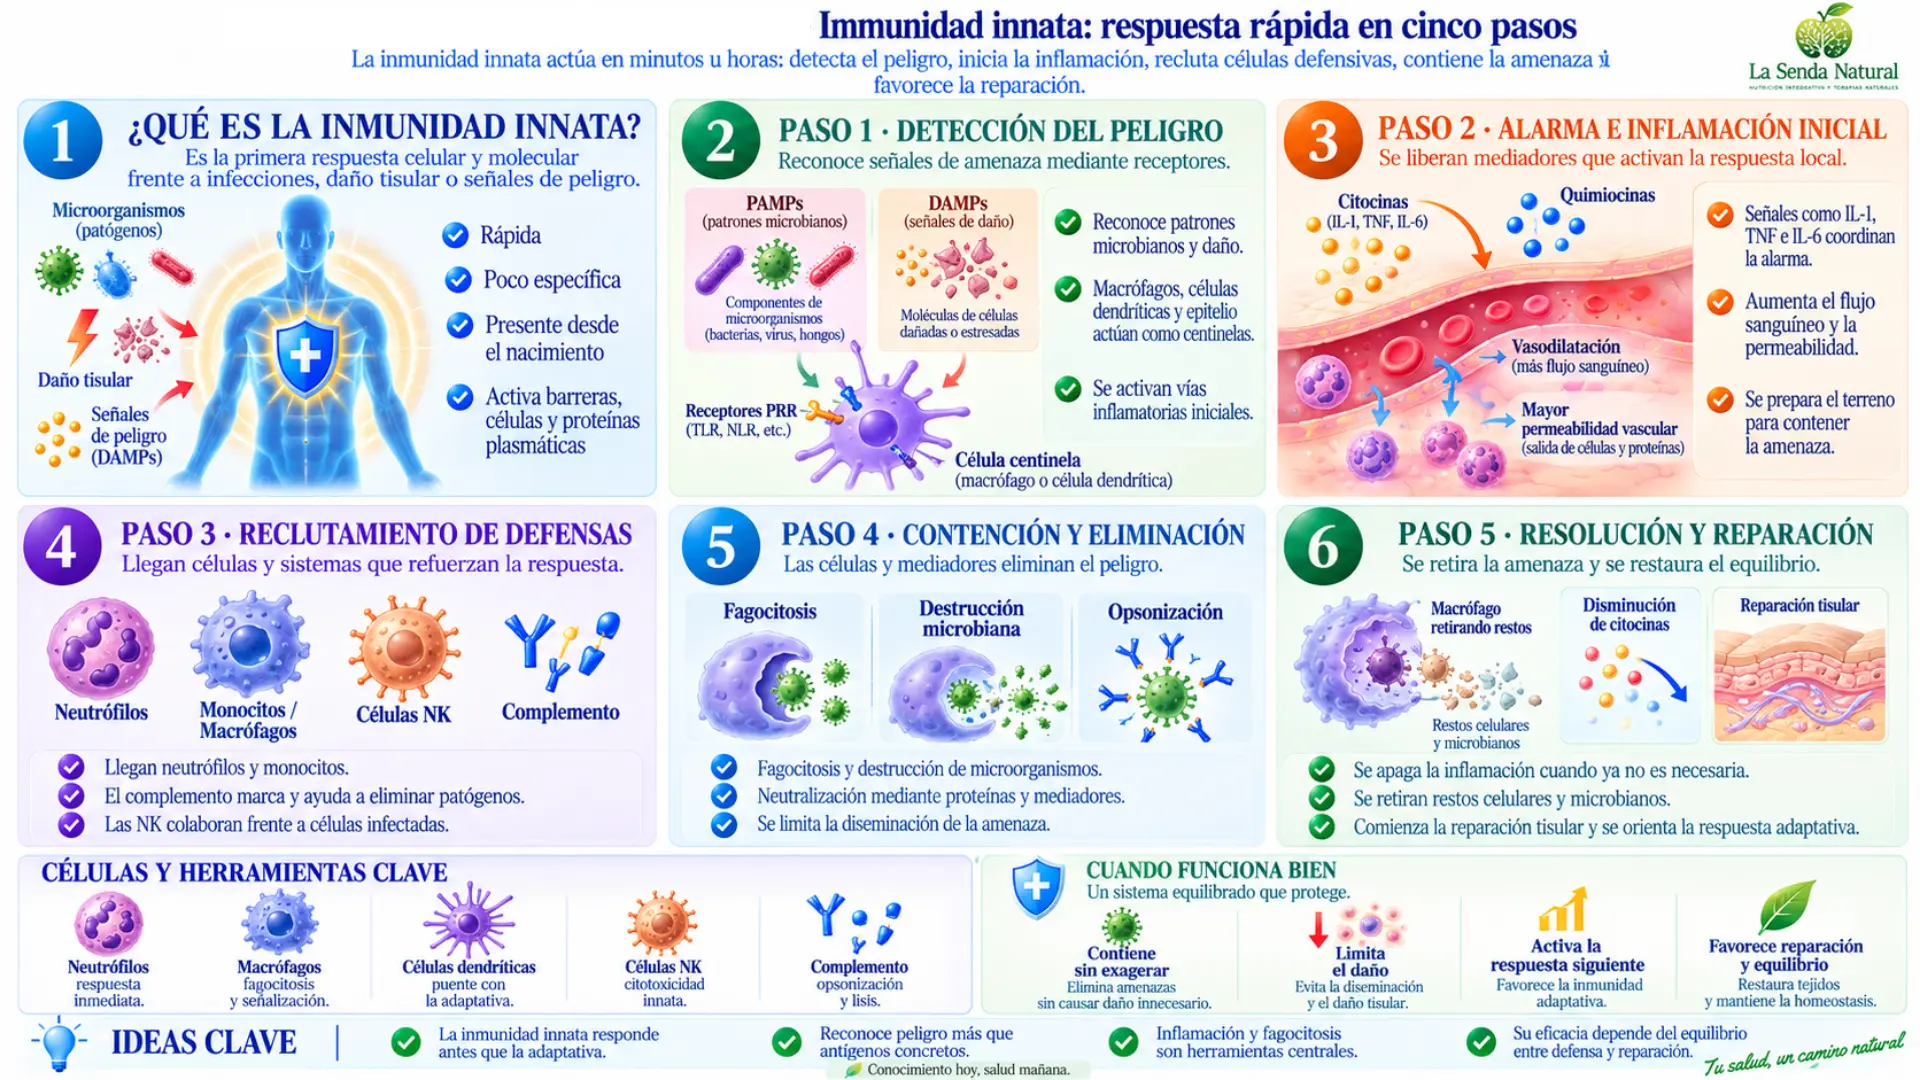
TNF-α, IL-1β, IL-6, quimiocinas, prostaglandinas y otros mediadores modifican el endotelio, aumentan el flujo sanguíneo y permiten la salida de proteínas y leucocitos. De ahí proceden calor, rubor, edema y dolor. A escala sistémica, estas señales pueden inducir fiebre, cambios metabólicos y síntesis hepática de proteínas de fase aguda como PCR, fibrinógeno y amiloide sérico A.
Una PCR elevada indica que existe una respuesta de fase aguda, pero no identifica por sí sola su causa. Puede aumentar por infección, lesión, enfermedad inflamatoria y otros procesos. Tampoco una PCR normal excluye todas las alteraciones inmunitarias.
Resolución: cómo termina la respuesta
La resolución no es el simple agotamiento de la inflamación. Incluye el cese del reclutamiento, apoptosis de neutrófilos, eferocitosis, reprogramación de macrófagos, drenaje de mediadores y reconstrucción de la barrera. Intervienen señales lipídicas especializadas, entre ellas lipoxinas, resolvinas, protectinas y maresinas, además de circuitos celulares y nerviosos [13,14].
Neutrófilo apoptótico → eferocitosis por macrófago → reducción de señales inflamatorias → mediadores proresolutivos → reparación tisular.
Si el estímulo persiste o la resolución fracasa, pueden mantenerse inflamación, remodelación y fibrosis. Por eso, modular una respuesta no equivale siempre a suprimirla: en ocasiones el objetivo biológico es permitir que complete correctamente su ciclo.
¿Tiene memoria la inmunidad innata?
La memoria específica clásica pertenece a los linfocitos T y B. Sin embargo, monocitos, macrófagos, células NK y sus progenitores pueden quedar reprogramados después de ciertas infecciones, vacunas o estímulos metabólicos. Este fenómeno, denominado inmunidad entrenada, implica cambios epigenéticos y metabólicos que alteran respuestas posteriores [15,16].
La inmunidad entrenada puede aumentar la protección frente a estímulos diferentes del inicial, pero también contribuir a inflamación crónica si la reprogramación es inapropiada. No significa que los macrófagos fabriquen receptores específicos equivalentes a los anticuerpos.
Cuando la inmunidad innata se desregula
Respuesta insuficiente
Las alteraciones de barreras, neutropenia, defectos fagocíticos, deficiencias del complemento o trastornos de señalización pueden favorecer infecciones características. La presentación clínica depende del componente afectado y no puede deducirse únicamente por el número de resfriados.
Respuesta excesiva o persistente
Una activación intensa puede producir lesión sistémica, alteración vascular y daño orgánico. En enfermedades metabólicas, cardiovasculares y neurodegenerativas pueden participar mecanismos innatos, pero su implicación no convierte automáticamente estas enfermedades en autoinmunes.
Enfermedades autoinflamatorias
En ellas predominan alteraciones de la inmunidad innata, con episodios de fiebre e inflamación y, en algunos casos, mutaciones que afectan inflamasomas u otras vías. Deben diferenciarse de las enfermedades autoinmunes clásicas, aunque existen zonas de solapamiento.
Qué significa cuidar la inmunidad innata
La primera defensa depende de barreras intactas, adecuada producción y renovación de células, metabolismo suficiente y regulación. Alimentación, sueño, ejercicio, vacunas indicadas, salud metabólica y abandono del tabaco influyen en el entorno, pero no existe una intervención universal capaz de “activar” de forma beneficiosa todos sus componentes.
Los micronutrientes intervienen en proliferación celular, enzimas antioxidantes, integridad epitelial y señalización. Corregir una deficiencia puede ser importante; superar las necesidades no garantiza una respuesta mejor y puede producir efectos adversos. La nutrición y la micronutrición se desarrollarán en artículos propios para no confundir fisiología con recomendaciones terapéuticas.
Conclusión
La inmunidad innata es la red de respuesta inmediata que protege las superficies, reconoce patrones de infección y daño, contiene amenazas y proporciona instrucciones a la inmunidad adaptativa. Su eficacia depende tanto de sus armas —fagocitosis, complemento, interferones y citotoxicidad como de sus frenos.
Entenderla obliga a superar tres simplificaciones: no es completamente inespecífica, no carece de capacidad de adaptación y no es beneficiosa cuanto más intensa sea. La respuesta adecuada debe aparecer en el lugar preciso, alcanzar la magnitud necesaria y finalizar mediante resolución y reparación.
Una inmunidad innata competente no es la que permanece en alerta máxima, sino la que detecta pronto, responde con precisión y sabe detenerse.
Preguntas frecuentes
¿Qué diferencia existe entre inmunidad innata y adaptativa?
La innata utiliza barreras y receptores preformados y responde rápidamente a patrones compartidos. La adaptativa utiliza receptores clonales de linfocitos T y B, desarrolla gran especificidad y genera memoria clásica.
¿La inmunidad innata es inespecífica?
No en sentido absoluto. Sus receptores distinguen familias de señales y contextos celulares, aunque no alcanzan la especificidad clonal de un anticuerpo o receptor T.
¿Qué son PAMP y DAMP?
Los PAMP son patrones asociados a microorganismos; los DAMP son señales propias liberadas o expuestas en un contexto de daño. Ambos pueden activar receptores innatos.
¿Qué células actúan primero en una infección?
Depende del tejido y del microorganismo. Las células residentes detectan inicialmente el problema y neutrófilos y monocitos pueden ser reclutados con rapidez.
¿El inflamasoma NLRP3 causa toda inflamación?
No. NLRP3 es una plataforma importante, pero existen otros inflamasomas y numerosas vías inflamatorias independientes de él.
¿Los macrófagos son M1 o M2?
Esa clasificación es una simplificación experimental. En los tejidos humanos aparecen múltiples estados funcionales intermedios y especializados.
¿La inmunidad innata tiene memoria?
Puede presentar inmunidad entrenada mediante reprogramación epigenética y metabólica, pero no es idéntica a la memoria específica de los linfocitos.
¿Es conveniente estimular la inmunidad innata con suplementos?
No de forma indiscriminada. La conveniencia depende de la situación clínica, el estado nutricional, el producto y la evidencia. Activar una vía inflamatoria no siempre es beneficioso.
Si presentas infecciones recurrentes, inflamación persistente, alteraciones digestivas o una enfermedad inmunitaria diagnosticada, la valoración debe ser individual. En La Senda Natural estudiamos alimentación, estado nutricional, composición corporal, descanso, estilo de vida, analíticas y tratamiento médico para diseñar un acompañamiento personalizado y coordinado con el seguimiento sanitario correspondiente.
Descargo de responsabilidad
Hemos realizado todos los esfuerzos posibles para garantizar que la información proporcionada sea precisa, actualizada y completa, pero no se ofrece ninguna garantía al respecto.
Esta información es un recurso de referencia diseñado como un complemento y no un sustituto de la experiencia, habilidad, conocimiento de los profesionales de la salud, ni pretende ser un diagnóstico ni una terapia referenciada.
La ausencia de una advertencia para un determinado suplemento/alimento o la combinación de los mismos no debe interpretarse de ninguna manera como una indicación de seguridad, eficacia o idoneidad para un paciente determinado.

Ultimos artículos publicados
Bibliografía
- Medzhitov R, Janeway CA Jr. Innate immunity. N Engl J Med. 2000;343:338-344. https://doi.org/10.1056/NEJM200008033430506
- Akira S, Uematsu S, Takeuchi O. Pathogen recognition and innate immunity. Cell. 2006;124:783-801. https://www.cell.com/cell/fulltext/S0092-8674(06)00190-5?
- Brubaker SW, Bonham KS, Zanoni I, Kagan JC. Innate immune pattern recognition: a cell biological perspective. Annu Rev Immunol. 2015;33:257-290. https://doi.org/10.1146/annurev-immunol-032414-112240
- Lemaitre B, Nicolas E, Michaut L, Reichhart JM, Hoffmann JA. The dorsoventral regulatory gene cassette spätzle/Toll/cactus controls the potent antifungal response in Drosophila adults. Cell. 1996;86:973-983. https://doi.org/10.1016/S0092-8674(00)80172-5
- Belkaid Y, Harrison OJ. Homeostatic immunity and the microbiota. Immunity. 2017;46:562-576. https://doi.org/10.1016/j.immuni.2017.04.008
- Matzinger P. The danger model: a renewed sense of self. Science. 2002;296:301-305. https://doi.org/10.1126/science.1071059
- Rock KL, Latz E, Ontiveros F, Kono H. The sterile inflammatory response. Annu Rev Immunol. 2010;28:321-342. https://doi.org/10.1146/annurev-immunol-030409-101311
- Ginhoux F, Guilliams M. Tissue-resident macrophage ontogeny and homeostasis. Immunity. 2016;44:439-449. https://doi.org/10.1016/j.immuni.2016.02.024
- Murray PJ, Allen JE, Biswas SK, et al. Macrophage activation and polarization: nomenclature and experimental guidelines. Immunity. 2014;41:14-20. https://doi.org/10.1016/j.immuni.2014.06.008
- Vivier E, Tomasello E, Baratin M, Walzer T, Ugolini S. Functions of natural killer cells. Nat Immunol. 2008;9:503-510. https://doi.org/10.1038/ni1582
- Ricklin D, Hajishengallis G, Yang K, Lambris JD. Complement: a key system for immune surveillance and homeostasis. Nat Immunol. 2010;11:785-797. https://doi.org/10.1038/ni.1923
- Fullerton JN, Gilroy DW. Resolution of inflammation: a new therapeutic frontier. Nat Rev Drug Discov. 2016;15:551-567. https://doi.org/10.1038/nrd.2016.39
- Serhan CN. Pro-resolving lipid mediators are leads for resolution physiology. Nature. 2014;510:92-101. https://doi.org/10.1038/nature13479
- Netea MG, Domínguez-Andrés J, Barreiro LB, et al. Defining trained immunity and its role in health and disease. Nat Rev Immunol. 2020;20:375-388. https://doi.org/10.1038/s41577-020-0285-6
- Netea MG, Quintin J, van der Meer JWM. Trained immunity: a memory for innate host defense. Cell Host Microbe. 2011;9:355-361. https://doi.org/10.1016/j.chom.2011.04.006
- Iwasaki A, Medzhitov R. Control of adaptive immunity by the innate immune system. Nat Immunol. 2015;16:343-353. https://doi.org/10.1038/ni.3123
- Broz P, Dixit VM. Inflammasomes: mechanism of assembly, regulation and signalling. Nat Rev Immunol. 2016;16:407-420. https://doi.org/10.1038/nri.2016.58
